
노화는 하드웨어가 닳는 일일까, 아니면 소프트웨어가 엉킨 일일까. 야마나카 인자는 그 질문에 "후자일지도 모른다"고 답하며, 세포에게 되감기 버튼을 쥐여 주었습니다. 다만 그 버튼을 어디까지 누를지는, 아직 아무도 모릅니다.
2012년 노벨상이 증명한 사실은 단순하지만 불온했습니다. 다 자란 피부세포 하나를, 네 개의 유전자만으로 수정란 직후의 만능세포로 되돌릴 수 있다는 것. 세포의 나이는 지워지는 것이었습니다.
그 뒤로 15년, 질문은 "되돌릴 수 있는가"에서 "어디까지, 안전하게, 어떻게 되돌릴 것인가"로 옮겨 왔습니다. 그리고 2026년, 그 질문은 마침내 실험실을 나와 사람의 눈 안으로 들어갔습니다(눈 나이 되돌릴 수 있을까… 안구 세포 회춘 청사진 제시). 이 글은 그 여정의 지도입니다. 야마나카 인자가 역노화 연구 지형에서 어디에 서 있는지, 어떤 원리로 작동하는지, 자연이 이미 생애에 두 번 수행하는 초기화는 어떤 기전인지, 그리고 상용화까지 남은 네 개의 자물쇠가 무엇인지를 그림으로 따라가 보겠습니다.
노화를 공격하는 네 갈래 길
노화를 늦추거나 되돌리려는 시도는 크게 네 진영으로 나뉩니다. 중요한 건 이들이 노화라는 강의 서로 다른 수심에서 그물을 던진다는 점입니다. 하류에서 증상을 건지는 쪽이 있고, 상류에서 원인의 수원(水源)을 막으려는 쪽이 있습니다.
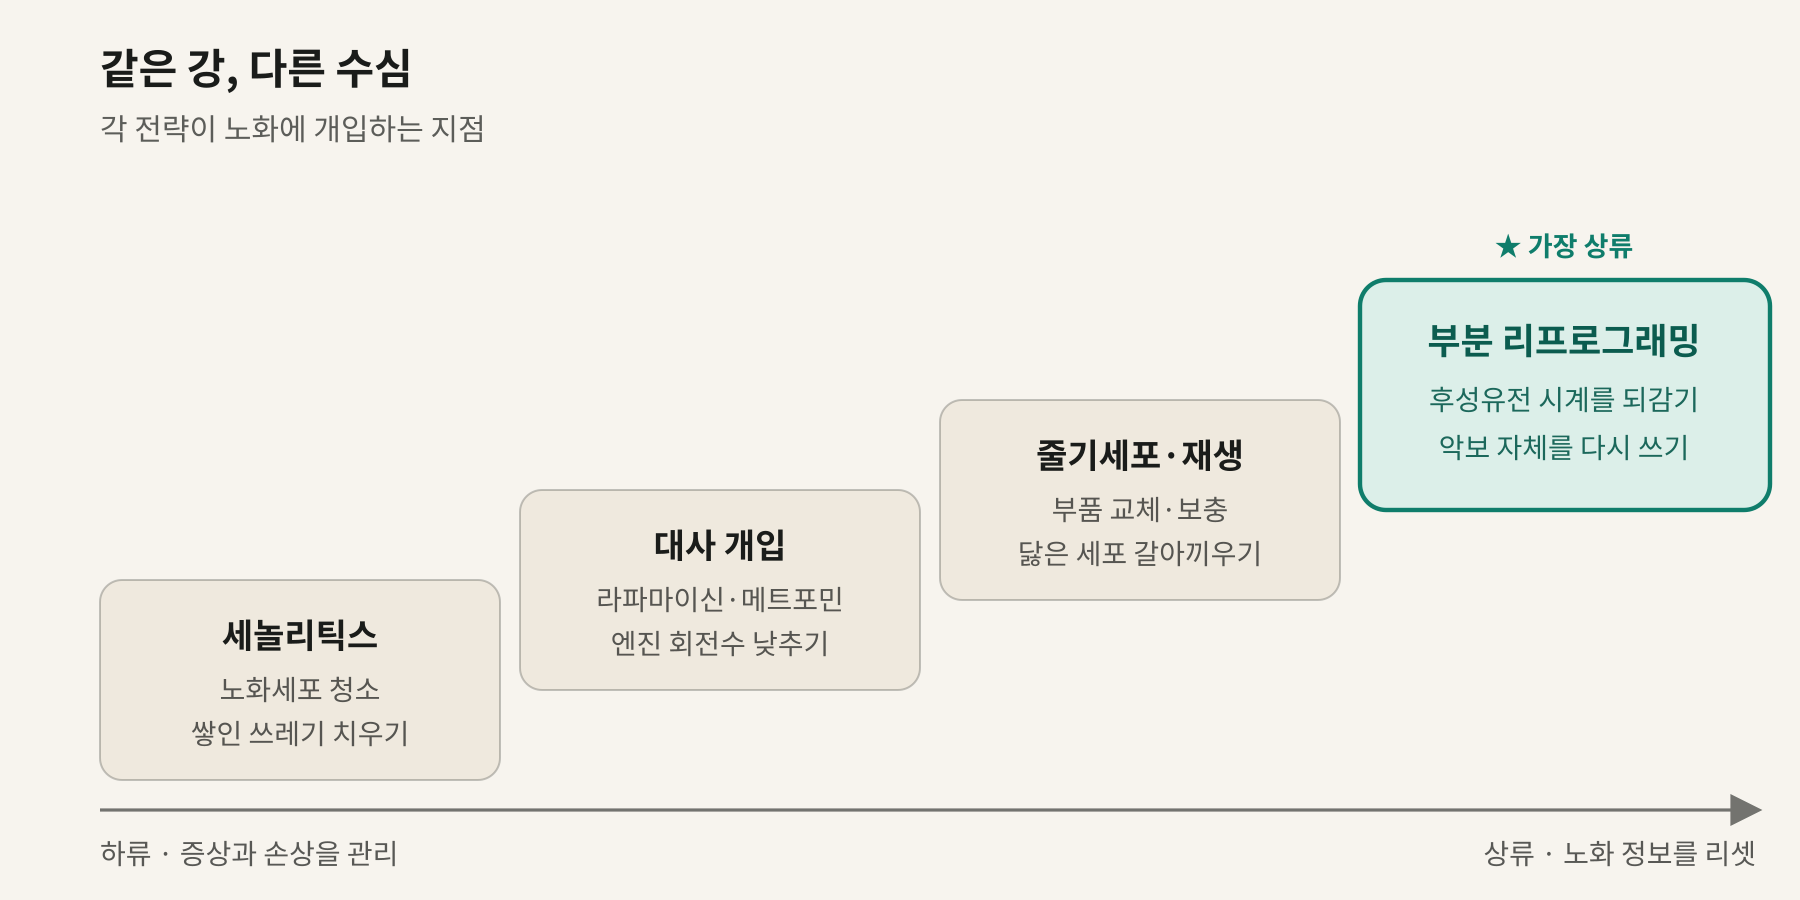
2023년 갱신된 '노화의 12대 특징(Hallmarks of Aging)' 목록에서 후성유전적 변화(epigenetic alterations)는 핵심 항목 중 하나입니다. 흥미로운 건, 이 특징이 다른 특징들의 상류에 있을 수 있다는 점입니다. 후성유전 상태를 리셋하면 그 아래 여러 특징이 함께 되돌아갈지 모른다는 가설, 이것이 리프로그래밍 진영이 가진 야심의 크기입니다. 한 개의 레버로 여러 개의 시계를 동시에 되감겠다는 것이니까요.
하드웨어는 멀쩡하다, 악보가 바랬을 뿐
세포의 유전체(DNA)는 하드웨어입니다. 평생 거의 바뀌지 않습니다. 그 위에 올라앉은 후성유전체(epigenome)는 소프트웨어입니다. 어떤 유전자를 켜고 끌지를 메틸화 표식과 히스톤 상태로 기록한, 일종의 악보입니다. 간세포와 뉴런은 똑같은 악보집(유전체)을 가지고도 전혀 다른 곡을 연주하는데, 그 차이가 바로 이 소프트웨어에 있습니다.
노화란 악보가 찢어지는 게 아니라, 연주자가 조금씩 엉뚱한 음을 더하며 원곡을 잊어가는 과정에 가깝습니다.
이 소프트웨어의 마모 정도를 숫자로 읽어내는 장치가 후성유전 시계(epigenetic clock)입니다. DNA 메틸화 패턴만 보고 "이 조직은 생물학적으로 몇 살"이라고 추정합니다. 그리고 리프로그래밍의 거의 모든 성과는 바로 이 시계로 측정됩니다. 와딩턴이 1950년대에 그린 저 유명한 '지형'으로 보면 이렇습니다.
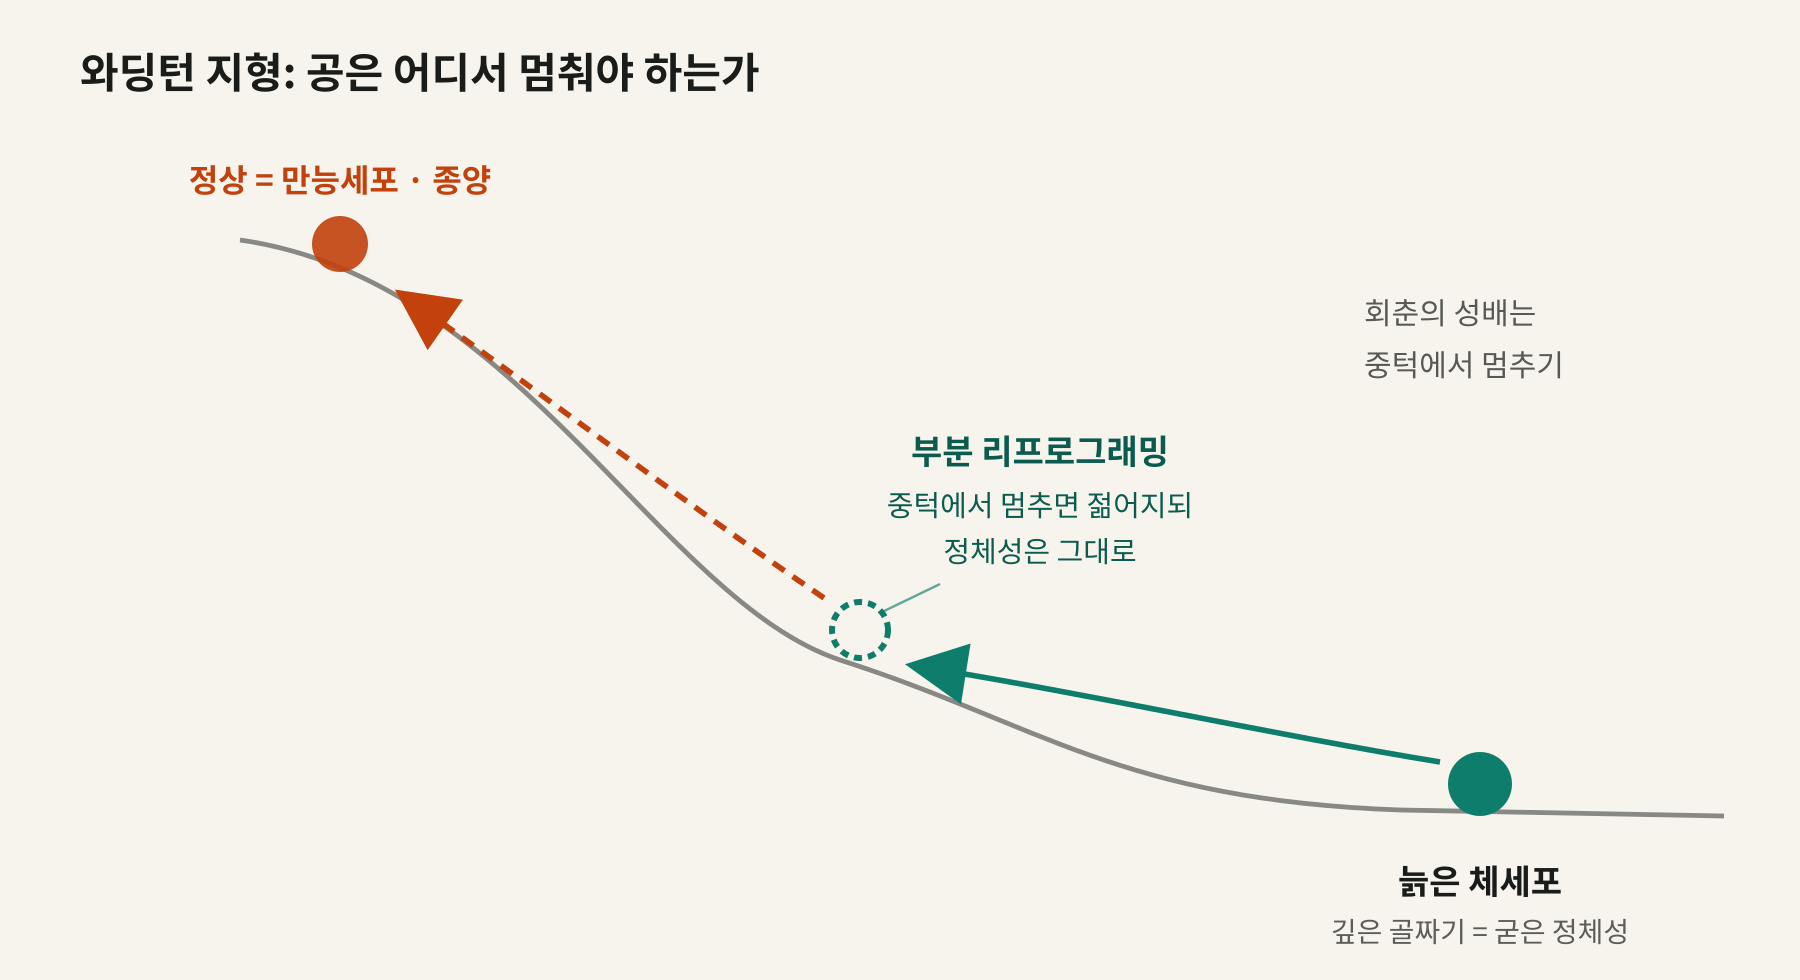
라이크 연구실은 2022년, 사람 피부 섬유아세포를 약 13일간만 리프로그래밍해 전사체·메틸화 나이를 약 30년 되돌리면서도 세포가 "나는 피부세포"라는 정체성을 잃지 않게 하는 데 성공했습니다. 게다가 늙어서 잃었던 콜라겐 생산능까지 회복했습니다. 중턱에서 멈추는 일이 원리적으로 가능하다는 증거였습니다.
네 글자의 되감기 버튼, OSKM
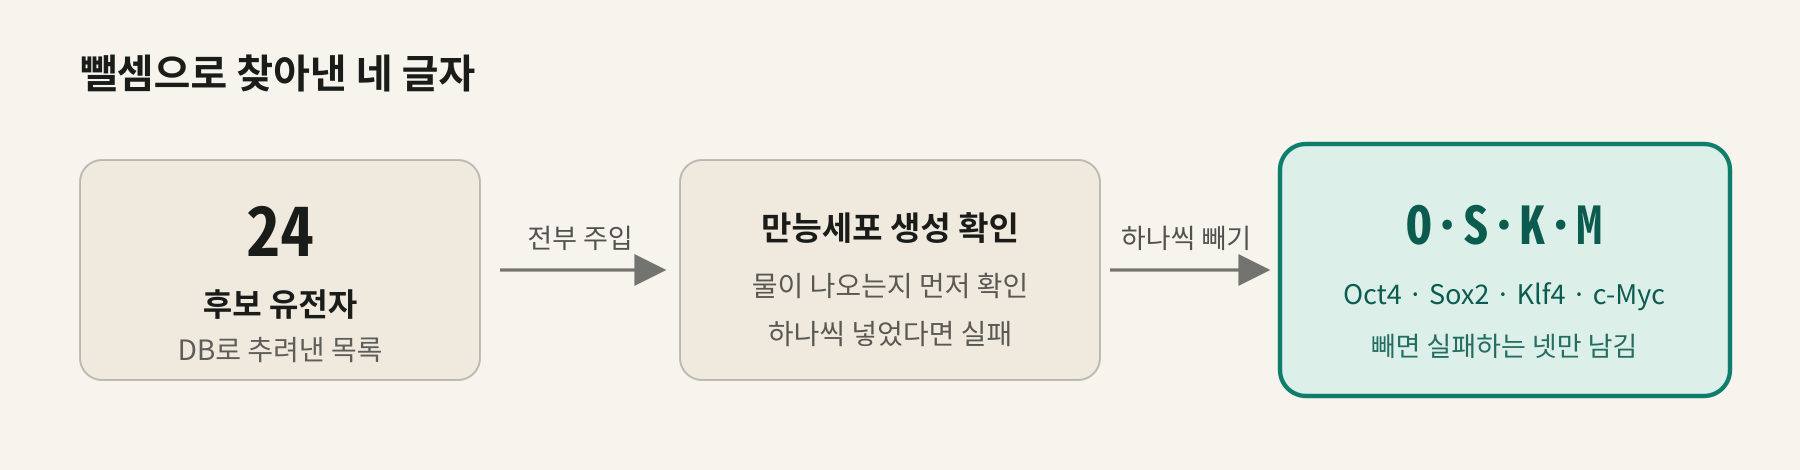
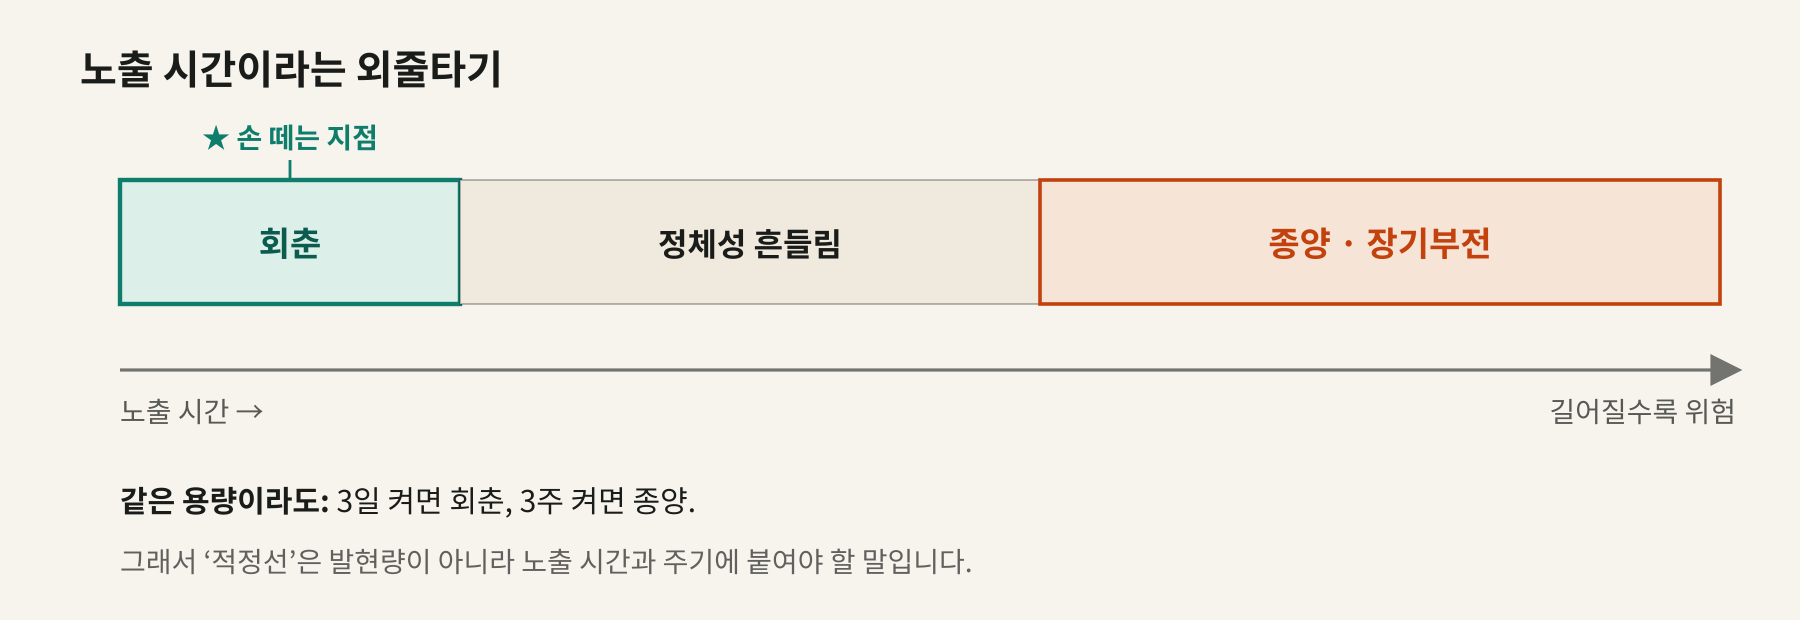
야마나카가 찾아낸 네 인자는 Oct4, Sox2, Klf4, c-Myc, 머리글자로 OSKM입니다. 이들은 평소 성체 세포에서 거의 꺼져 있는 유전자입니다. 역노화는 이들을 "원래 수준으로 회복"시키는 게 아니라, 외부에서 강제로 잠깐 켰다가 끄는 일입니다. 핵심은 발현의 양이 아니라 시간에 있습니다.
발견 과정 자체가 한 편의 공학이었습니다. 유전자 데이터베이스로 만능세포에서만 켜지는 후보를 24개로 좁힌 뒤, 전부 집어넣어 성공을 확인하고, 하나씩 빼 보며 꼭 필요한 넷만 남겼습니다.
진짜 문제: 되감기는 두 단계로 진행된다
OSKM을 켜면 세포 안에서 두 가지 일이 순서대로 일어납니다. 먼저 후성유전 시계가 되감깁니다(회춘). 그다음 세포가 자기 정체성을 잃기 시작합니다(탈분화). 젊어지는 효과는 1단계에서 나오고, 모든 위험은 2단계에서 나옵니다. 그래서 이 기술은 1단계와 2단계 사이의 좁은 틈에서 손을 떼는 기술입니다.
자연은 이미, 생애에 두 번 지운다
여기서 한 번쯤 물어야 할 질문이 있습니다. 그 되감기 버튼은 대체 왜 우리 세포 안에 남아 있을까요? 답은 화살표의 방향을 뒤집어야 보입니다. 되감기 위해 남은 것이 아니라, 애초에 감기 위해 존재하는 장치를 우리가 거꾸로 돌려 쓰고 있는 것입니다.
사실 "버튼"이라는 단일 장치는 없습니다
네 인자가 비상용 리셋 스위치로 어딘가 봉인돼 있는 게 아닙니다. Oct4 정도가 배아와 생식계열 전용이고, Sox2는 성체 신경줄기세포 같은 구획에서도 현역입니다. c-Myc에 이르면 잠들어 있기는커녕 성체 세포에서 가장 바쁜 증식 조절자이고, 그래서 악명 높은 암유전자이기도 합니다. 야마나카가 찾아낸 건 숨은 버튼이 아니라, 서로 다른 시간대에 속한 레버 넷을 동시에 당기면 세포가 배아 상태를 재구성한다는 사실이었습니다. 버튼이라기보다, 네 손가락으로 한꺼번에 짚어야 소리가 나는 화음에 가깝습니다.
그런데 진짜 초기화는 자연이 이미 수행합니다
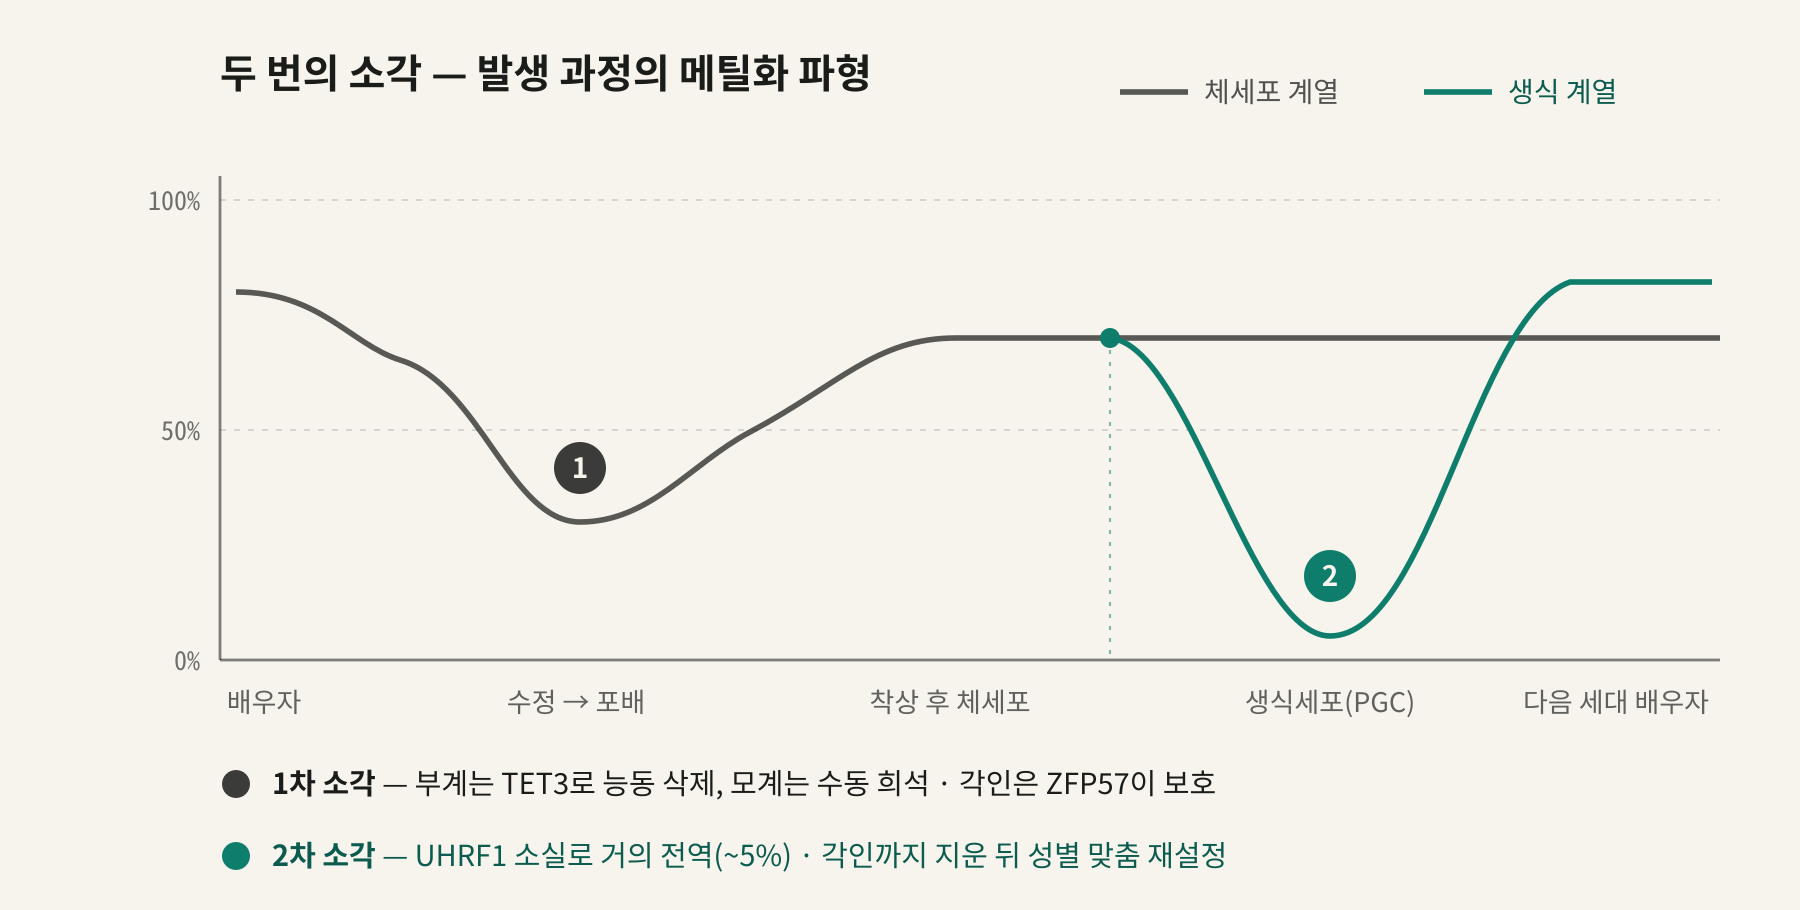
후성유전 나이는 평생 쌓이기만 하는 장부가 아닙니다. 생애 중 딱 두 번, 그것도 특정 계열에서만 바닥까지 소각됩니다. 발생 과정의 DNA 메틸화 수준을 그려 보면 두 개의 깊은 골짜기가 드러납니다.
1차 소각 — 수정란의 비대칭
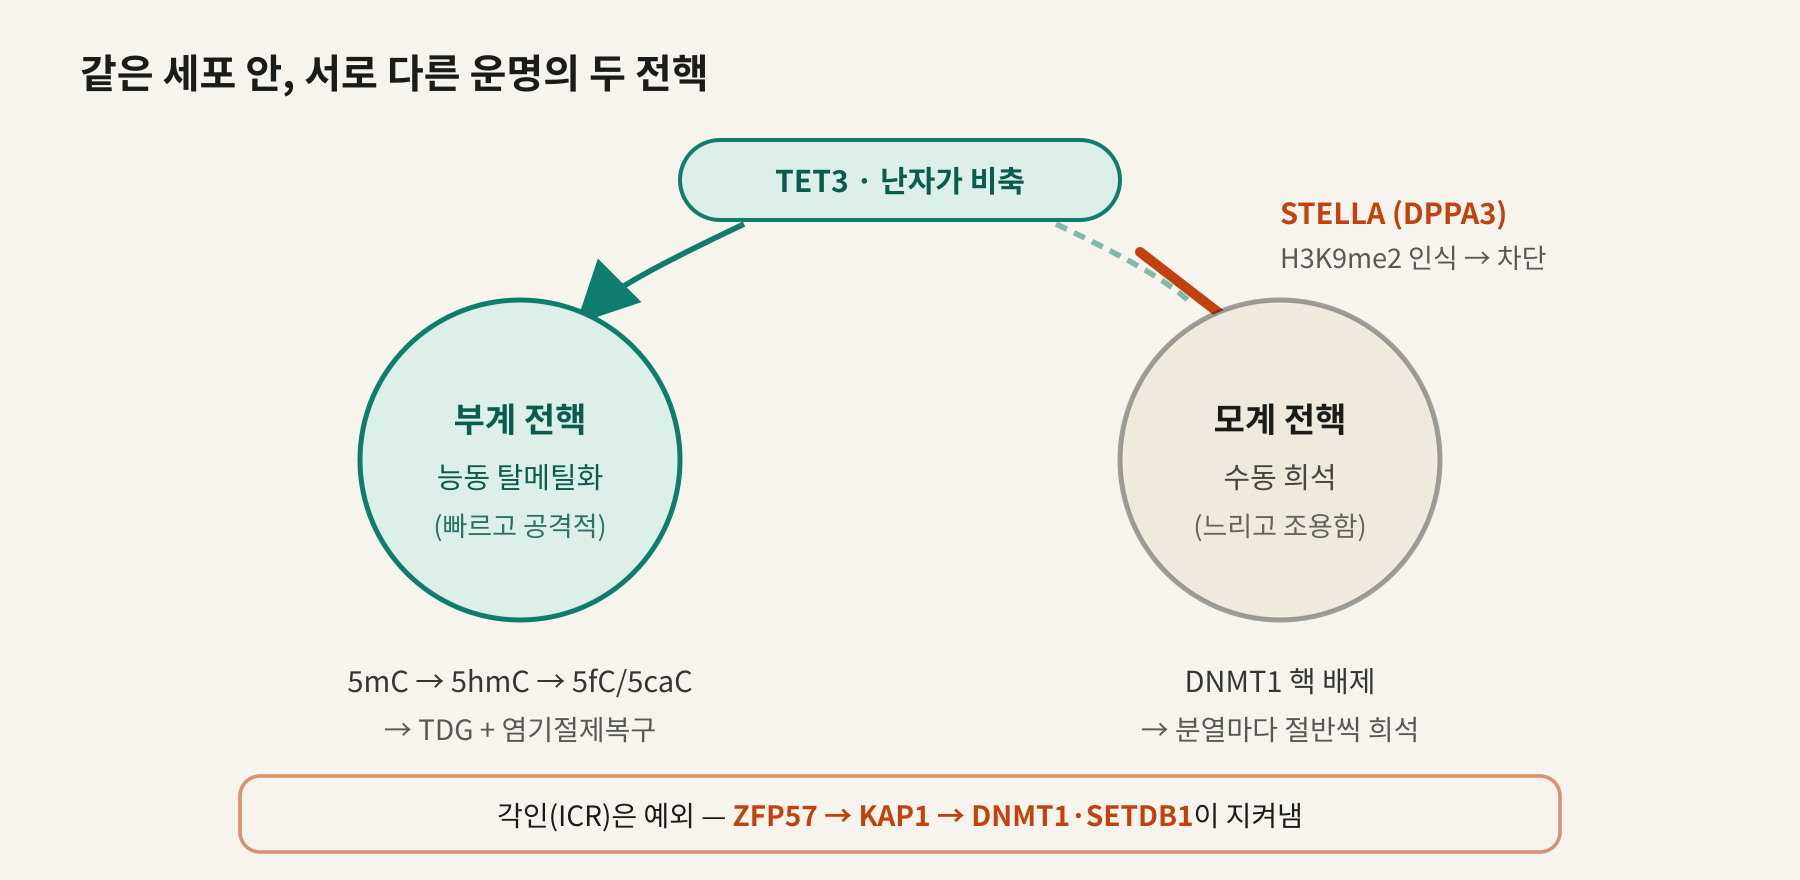
수정 직후의 소각에는 기묘한 편애가 있습니다. 부계와 모계 유전체가 전혀 다른 공법으로 지워집니다.
부계 쪽은 급하고 공격적입니다. 먼저 샤페론 HIRA가 히스톤 변이체 H3.3을 깔아 정자의 프로타민 포장을 통째로 걷어냅니다. 이어 난자가 비축해 둔 TET3가 5mC를 5hmC → 5fC → 5caC로 차례로 산화시키고, TDG와 염기절제복구가 잘라냅니다. 반면 모계 쪽은 지우개를 들지 않습니다. 유지 메틸화효소 DNMT1을 핵에서 배제해 복사를 중단할 뿐입니다. 분열할 때마다 절반씩 옅어지는 조용한 방식입니다.
이 비대칭을 집행하는 분자가 밝혀져 있다는 점이 아름답습니다. STELLA(DPPA3)가 모계 유전체에 풍부한 H3K9me2 표식에 달라붙어 TET3의 접근을 물리적으로 막습니다. 소각장 한쪽에만 "지우지 말 것"이라는 포스트잇을 붙여 둔 셈입니다.
2차 소각 — 원시생식세포의 전역 초기화
이쪽이 훨씬 급진적입니다. 생쥐 기준 CpG 메틸화가 약 70%에서 5~10%까지 떨어집니다. 포유류 생애에서 가장 철저한 소각입니다.
지휘부는 BLIMP1(PRDM1) · PRDM14 · TFAP2C 삼인방입니다. BLIMP1이 체세포 운명 프로그램을 억누르고, PRDM14가 초기화를 밀어붙이며 de novo 메틸화효소를 눌러 둡니다. 지우는 방식의 주력은 뜻밖에도 수동 희석인데, UHRF1의 소실이 결정적입니다. UHRF1은 반(半)메틸화 DNA를 인식해 DNMT1을 끌어오는 어댑터라, 이게 사라지면 유지 메틸화가 통째로 멈춥니다. 남은 자리, 특히 각인 영역과 생식세포 특이 프로모터는 TET1/TET2가 능동 산화로 마무리합니다.
여기서는 1차와 정반대로 각인이 의도적으로 철거됩니다. 그리고 성별에 맞춰 새로 찍힙니다. 수컷은 출생 전 전정자원세포에서, 암컷은 출생 후 성장 난포에서, DNMT3A/DNMT3L이 새 표식을 새깁니다. 메틸화를 걷어내면 레트로트랜스포존이 깨어나는 부작용이 따르는데, 이를 piRNA 경로(MILI/MIWI2)가 다시 눌러 줍니다. 소각 중 불씨가 튀지 않게 지키는 소방대입니다.
| 1차 · 수정란 | 2차 · 원시생식세포 | |
|---|---|---|
| 주 기전 | 부계 능동(TET3+TDG) 모계 수동(DNMT1 배제) | 수동 희석(UHRF1 소실) + TET1/2 마무리 |
| 깊이 | 부분적 (~30%) | 거의 전역 (~5%) |
| 각인 | 보호 (ZFP57–KAP1) | 삭제 후 성별 맞춤 재설정 |
| 비대칭 집행 | STELLA가 TET3 차단 | 해당 없음 |
| 목적 | 두 유전체를 하나의 전능 상태로 | 다음 세대를 위한 완전 초기화 |
왜 하필 생식계열에만 남겨 두었나
자연선택이 불멸로 유지해야 하는 계보는 단 하나, 생식계열입니다. 바이스만의 통찰대로 생명의 연속성은 생식세포라는 가느다란 실을 타고 흐르고, 체세포는 그 실을 다음 세대까지 나르기 위해 임시로 지은 운반체입니다. 커크우드의 일회용 신체(disposable soma) 가설이 말하는 바도 같습니다. 수선에는 에너지가 들고, 그 예산은 번식에 쓰는 편이 유전자 입장에선 이득입니다.
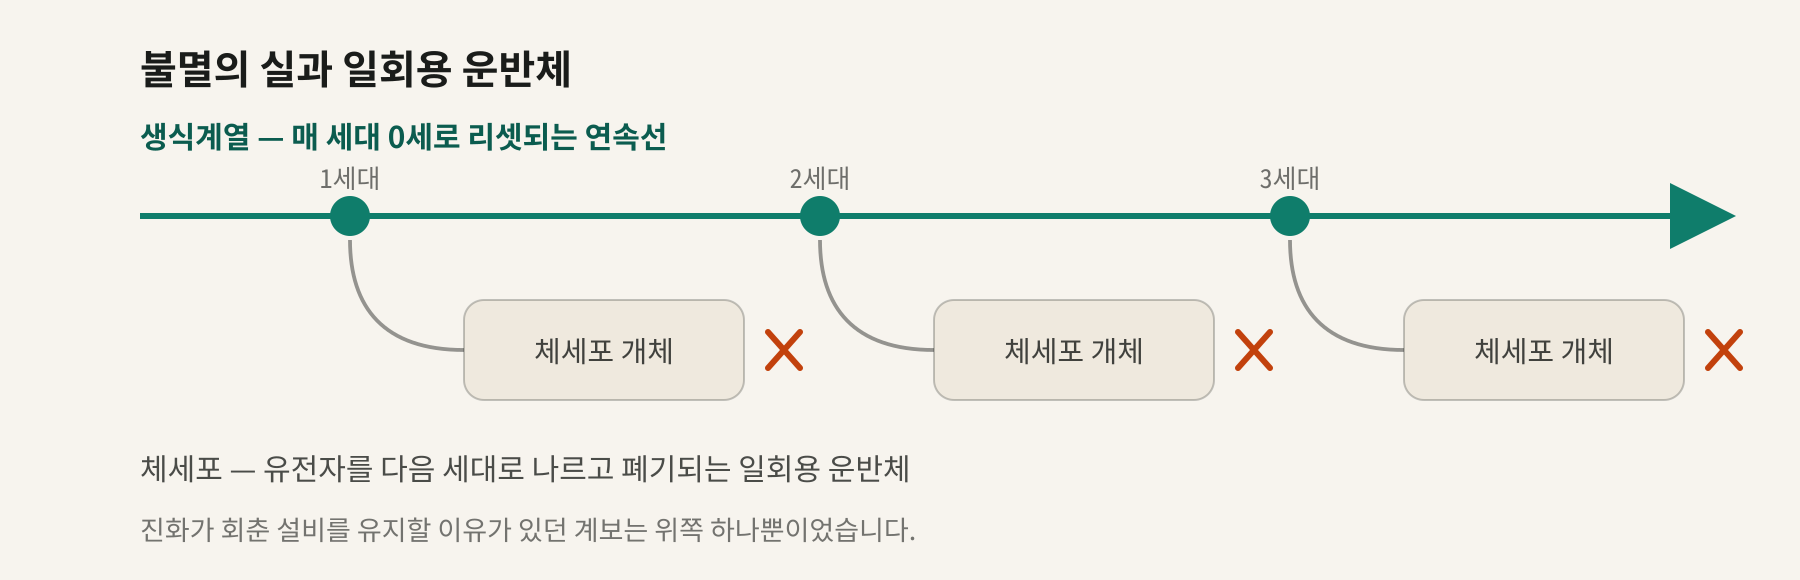
그리고, 조금 반직관적인 발견이 있습니다. 후성유전 시계로 재면 생물학적 나이의 바닥은 수정 그 순간이 아니라 초기 배아기 어딘가에 있는 것으로 보입니다. 수정 직후엔 시계가 오히려 약간 올라갔다가, 착상 전후에 최저점을 찍고 거기서부터 평생의 상승이 시작된다는 관찰이고, '그라운드 제로(ground zero)' 가설이라 불립니다. 사실이라면 의미심장합니다. 되감기에도 목적지 주소가 필요한데, 그 주소가 "수정란"이 아니라는 뜻이니까요.
그리고 이것이 치료와 만나는 지점
망막 OSK 연구에서 회춘 효과가 TET1/TET2 의존적이라는 점이 확인됐습니다. 우리가 체세포에 OSK를 넣어 일으키는 되감기는, 생식계열과 배아가 쓰는 바로 그 탈메틸화 기계를 다시 돌리는 일일 가능성이 큽니다. 새 기계를 발명한 게 아니라 창고에 있던 기계의 시동을 거는 쪽에 가깝습니다.
그런데 여기서 체세포 역노화의 근본 난점이 다시 모습을 드러냅니다. 자연의 리셋은 '전역 소각 + 전면 재설계'가 한 세트입니다. 지우고 나서 처음부터 다시 쓸 수 있기 때문에 그렇게 과감하게 지울 수 있습니다. 반면 우리는 지우되 다시 쓰지는 않기를 원합니다. 간세포가 간세포로 남아 있어야 하니까요.
불은 지르되 집은 태우지 말라는 주문입니다. 진화는 그런 소방 훈련을 받아 본 적이 없습니다.
그림 2와 그림 4가 보여준 그 좁은 안전 구간이 왜 그토록 아슬아슬한지, 답이 여기 있습니다. 우리는 전체 소각용으로 설계된 소각로에 "70%만 태워 달라"고 주문하고 있는 것입니다. 정밀 표적 탈메틸화(dCas9–TET 같은 국소 편집)가 다음 수순으로 거론되는 이유도 같습니다. 전역 소각이 아니라 지울 줄을 골라 지우는 기술이 있어야, 체세포에서 안전한 되감기가 성립합니다.
어디에, 어떻게 넣을 것인가
원리가 아무리 우아해도, 네 인자를 필요한 세포 안까지 안전하게 배달하지 못하면 아무 일도 일어나지 않습니다. 그리고 여기서 역노화는 생물학이 아니라 물류학(物流學)이 됩니다.
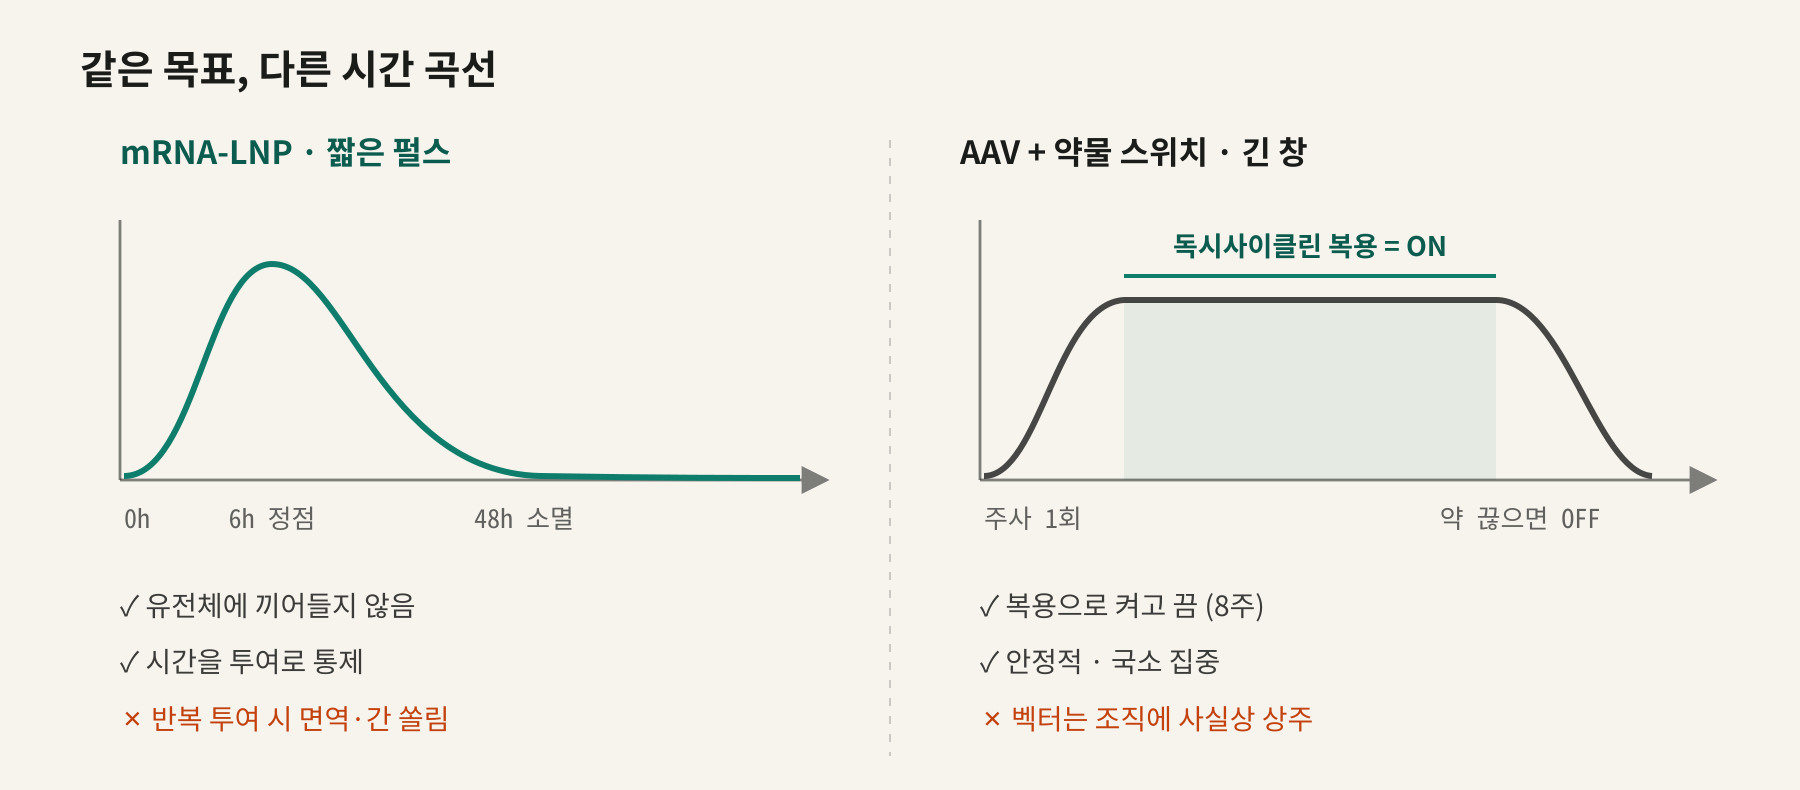
전달체: 저절로 꺼지는 mRNA vs 스위치 달린 AAV
두 가지 주력 배송 방식이 경쟁합니다. 하나는 코로나 백신으로 유명해진 mRNA-지질나노입자(LNP), 다른 하나는 유전자치료의 표준인 AAV 바이러스 벡터입니다. 그림 4의 "저절로 꺼지는 설계"를 두 방식이 전혀 다르게 구현합니다.
표적: LNP는 가만두면 간으로 떨어진다
정맥에 넣은 LNP는 설계자의 의도와 무관하게 대부분 간으로 흘러갑니다. 혈중에서 ApoE 단백질을 뒤집어쓰고 간세포 수용체에 끌려가기 때문입니다. 그러니 간은 조준한 표적이 아니라 중력이 떨어뜨리는 웅덩이입니다. 실제로 2025년 국내 연구진(서울대·연세대 계열)은 갈락토스를 붙인 간 표적 LNP로 OSKM을 넣어, 급성 간손상 쥐의 간을 재생시키면서 30일 관찰에서 종양 없이 회복시켰습니다. 간엔 축복이지만, 다른 장기를 노리려면 이 중력을 거슬러야 합니다.
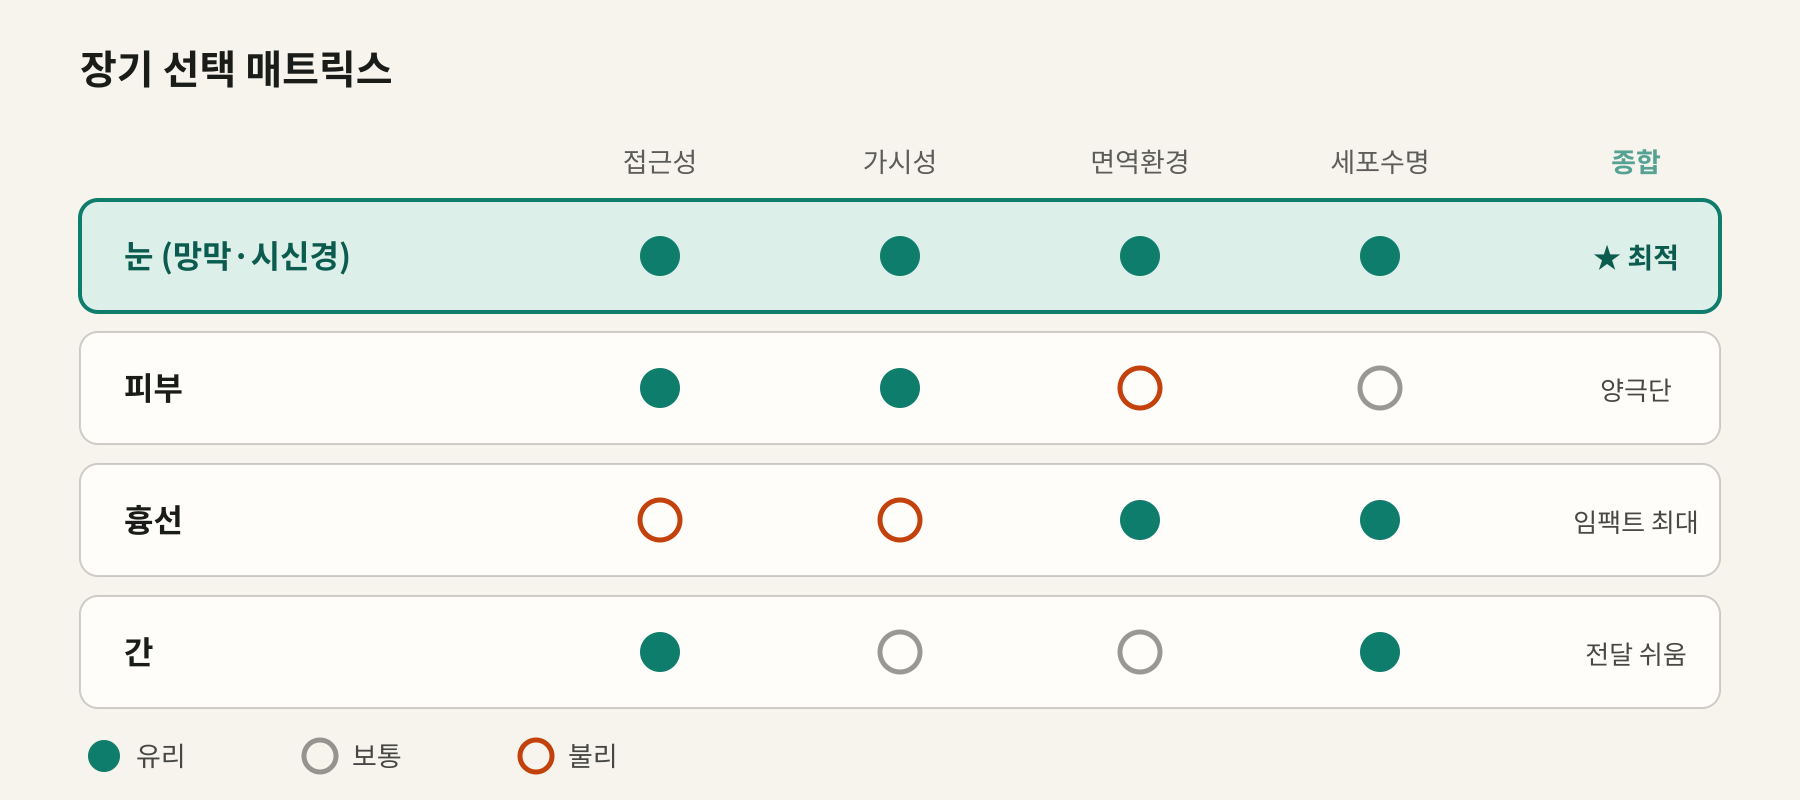
그래서, 역노화 효과가 가장 극명한 장기는?
"접근성(전달 난이도) × 가시성(효과 판독) × 면역환경 × 세포 회전율" 네 축으로 장기를 줄 세우면, 승자는 뜻밖에도 눈입니다.
2026년, 되감기가 사람 눈에 들어가다
이론의 외줄타기가 마침내 임상으로 내려왔습니다. 2026년 10월, Life Biosciences가 세계 첫 부분 리프로그래밍 임상(ER-100)의 초기 결과를 발표했습니다. 앞의 그림들이 예고한 선택들이 거의 그대로 구현돼 있습니다.
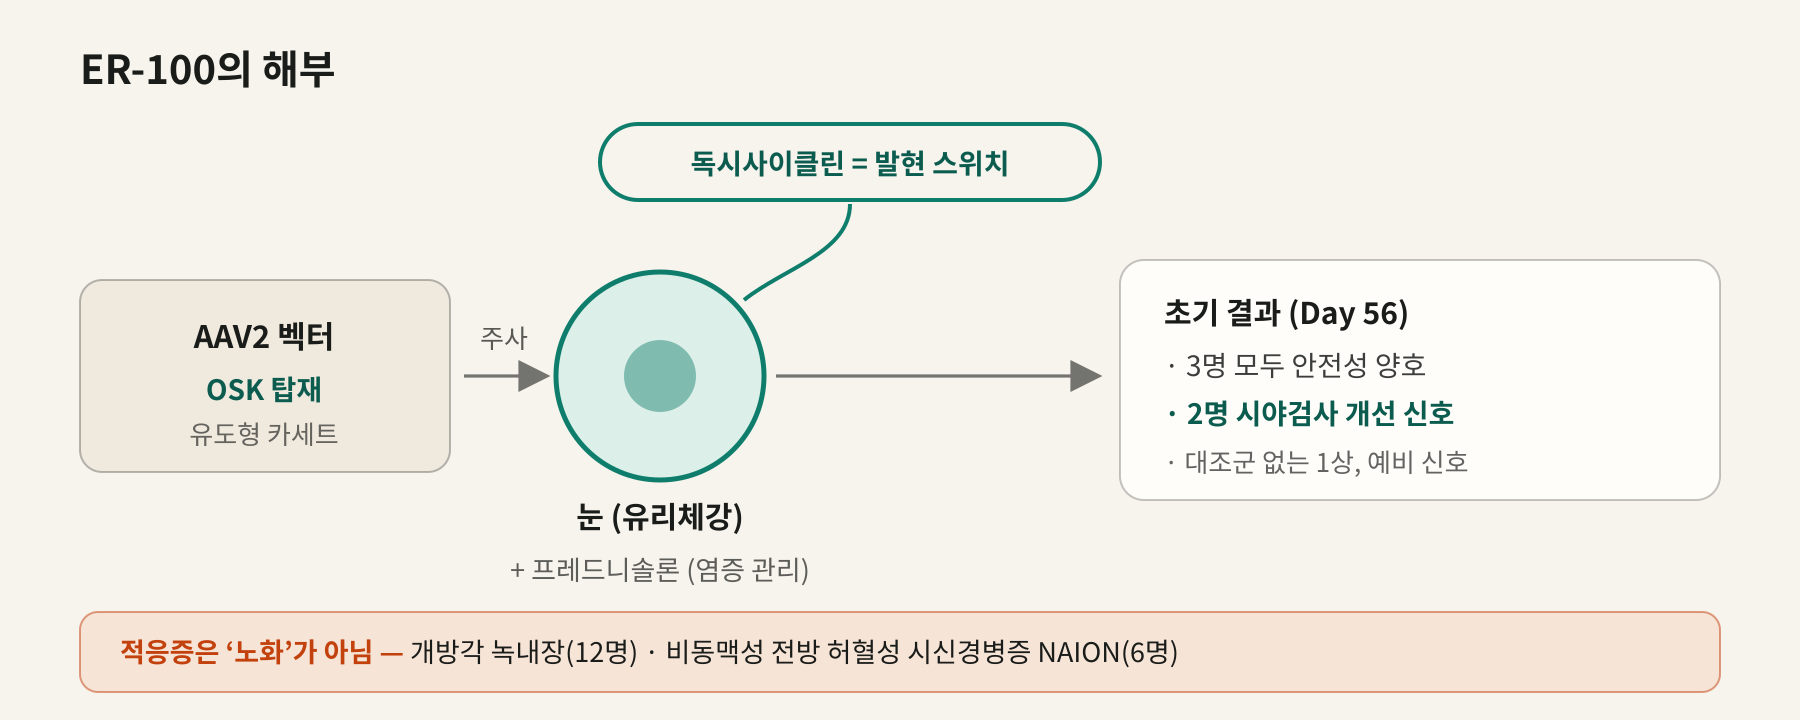
참고로, 이 임상의 공식 적응증은 시신경 질환이지 노화가 아닙니다. 등록된 1차 평가지표는 전부 안전성 항목입니다. "노화 역전"이라는 표현은 적응증·평가지표·규모라는 세 계단을 건너뛴 서사에 가깝습니다. 한 분석가의 계산에 따르면, 널리 인용되는 동물실험의 "수명 +109%"는 주사 시점 기준 남은 수명의 증가일 뿐, 전체 중앙수명으로 환산하면 약 +7% 수준입니다. 게다가 2026년 현재까지 FDA가 승인 대리지표로 인정한 후성유전 시계는 없습니다. 시계가 되돌아갔다는 것과 사람이 실제로 더 오래 건강하게 산다는 것 사이에는, 아직 놓이지 않은 다리가 있습니다.
상용화까지 남은 네 개의 자물쇠
야마나카 인자가 수명 연장 기술로 자리 잡으려면, 공학적으로 네 개의 자물쇠를 차례로 풀어야 합니다. 어느 하나도 아직 완전히 열리지 않았습니다.
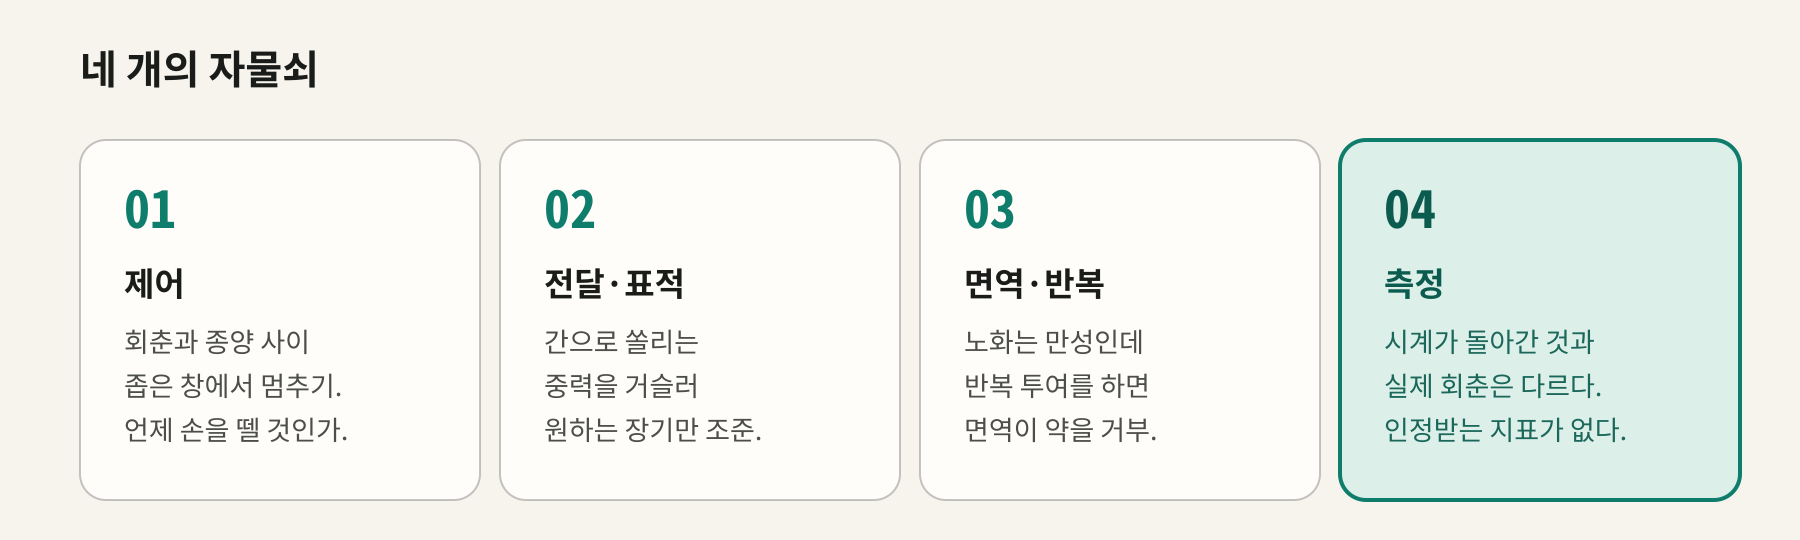
가장 뜨거운 인자가, 모든 전장에서 주인공인 것은 아닙니다.
흉선 재생엔 FOXN1이, 간 재생엔 간 특이적 전달이 더 중요하듯, 역노화는 "만능 인자 하나 찾기"가 아니라 장기별 맞춤 공학으로 가고 있습니다. OSKM은 범용 리셋 버튼이고, 그 버튼을 어느 방에서 몇 초간 누를지는 방마다 다른 설계 문제입니다.
진화가 내려놓은 시계
진화는 되감기 설비를 생식계열에만 설치했습니다. 번식기 이후의 몸은 자연선택의 관심 밖이었으니까요. 야마나카 인자가 보여준 건, 그 설비의 도면이 모든 세포 안에 고스란히 남아 있다는 사실입니다. 애초에 우리 몫으로 배정된 적 없는 연장을, 체세포가 생식세포의 공구함에서 빌려 든 셈입니다.
다만 집어 든 연장이 정교한 수술칼인지 둔탁한 망치인지는 아직 확실치 않습니다. 2026년의 눈 임상은 그 칼을 가장 안전한 방 한 칸에서 처음으로 써 본 사건입니다. 저택 전체를 리모델링하겠다는 선언보다, 서재 한 칸을 완벽히 복원해 사람들을 초대하는 쪽이 이기는 게임이라는 걸, 이 분야는 이제 아는 듯합니다.
수명 연장의 진짜 승부는 "온몸을 몇 살 젊게"가 아니라, "닫힌 방 하나를 확실히 되돌려 증명하기"에서 먼저 갈립니다. 그 방이 지금은 눈이고요.
되감기 버튼은 발견됐습니다. 남은 건 그 버튼에 정확한 눈금과 멈춤장치를 다는 일입니다. 그리고 그 눈금의 이름이, 어쩌면 우리가 매일 재고 있는 후성유전 시계일지도 모릅니다.
참고 자료
- Life Biosciences, ER-100 1상 초기 결과 (2026.10) — Fight Aging! 정리 · 임상등록 NCT07290244
- "OSK's First Human Trial Isn't Treating Aging" — Paul Kuo (2026), 적응증·평가지표·수명 수치에 대한 비판적 분석
- 최초의 리프로그래밍 임상 개시 보도 — MIT Technology Review (2026.01)
- 장기 표적 mRNA 전달 부분 리프로그래밍(간 재생) — bioRxiv (2025)
- 노화의 특징(12 Hallmarks of Aging) — López-Otín et al., Cell (2023)
- 역노화 바이오텍 지형 — Labiotech (2026)
배경 사실(야마나카 2006/2007, 노벨상 2012, Ocampo 2016, Lu 2020, Gill/Reik 2022, TRIIM 흉선, 그리고 수정란·생식세포 초기화 기전의 TET3 · STELLA · ZFP57 · UHRF1 · PRDM14 등)은 널리 확립된 연구에 기반합니다. 이 글은 교육·정보 목적의 해설이며, 의학적 조언이 아닙니다. 임상 수치는 소규모 초기 결과로 해석에 주의가 필요합니다.